植物根系径向结构从外到内主要由表皮、皮层、内皮层和中柱构成,其中皮层与内皮层共同组成根基本组织(root ground tissue, GT),并围绕中柱形成同心圆对称性排列。GT 是水分、矿质养分和激素径向运输及横向转运的关键组织,其发育受环境信号、植物激素和复杂基因调控网络的精细调控。与拟南芥不同,水稻GT具有多层皮层结构,并在后期形成通气组织以适应淹水环境,且不同水稻根类型皮层细胞层数存在较大差异,暗示水稻存在独特的皮层发育调控机制。拟南芥研究表明转录因子IDD、SHR等家族成员在GT建成中至关重要,但这些基因是否以保守或全新机制参与水稻GT发育调控仍不清楚。
近日,广西大学亚热带农业生物资源保护与利用国家重点实验室夏继星课题组在国际著名学术期刊《Science Advances》在线发表了题为“The transcription factors OsIDD and OsSHR jointly regulate ground tissue patterning and differentiation in rice roots”的研究论文。该研究系统揭示了转录因子OsIDD与OsSHR家族成员共同调控水稻根皮层结构模式和功能分化的分子机制。
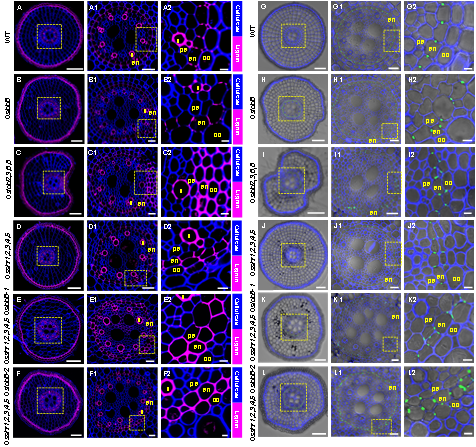
图 1 根皮层结构、木质素分布与OsCASP1定位在野生型和不同突变体中的比较分析
研究发现,OsIDD2/3/6/8共同参与水稻根皮层对称性发育,其中OsIDD8起主导作用。OsIDD8单突变即可导致皮层细胞分裂紊乱与径向对称性丧失(图1 A-B,G-H);而Osidd2,3,6,8四突变体皮层不对称加剧,且内皮层木质素异常沉积程度与OsCASP1异位定位频率均显著高于Osidd8单突变体(图1 A-C2,G-I2)。此外,OsSHRs不参与皮层径向对称性调控,但以OsIDD8依赖的方式负向调控皮层细胞平周分裂:Osshr1,2,3,4,5五突变体仅在内皮层邻近的内层皮层细胞中出现额外平周分裂,导致局部皮层数量增加,但并不影响整体径向对称性(图1 D-D1,J-J1)。六突变体Osshr1,2,3,4,5 Osidd8根解剖结构与Osidd8单突变体高度相似,OsSHR缺失既不加剧皮层不对称,也不诱导皮层层数局部增加(图1 E,F,K和L)。在内皮层分化层面,OsIDD与OsSHR功能冗余且协同调控OsCASP1定位及木质素沉积,其中OsIDD8是维持OsCASP1正常定位及木质素正常沉积的必要条件。在六突变体Osshr1,2,3,4,5 Osidd8中,异常的OsCASP1-GFP定位及木质素沉积频率高于四突变体Osidd2,3,6,8与五突变体Osshr1,2,3,4,5,表现出明显的叠加效应(图1 A-F)。上述结果表明,OsSHR并不参与OsIDD8介导的水稻根皮层对称性发育,但可能通过与OsIDD8互作的方式负向调控皮层细胞的平周分裂。此外,二者还协同调控水稻根内皮层的发育与功能分化。
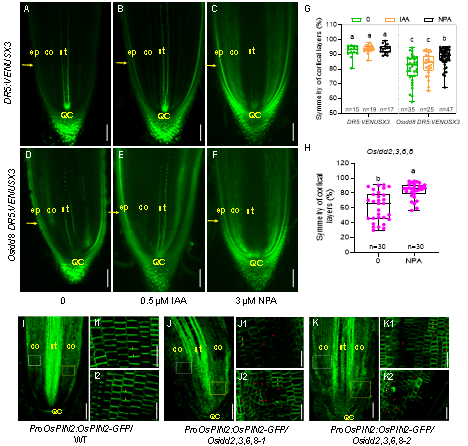
图2 生长素及其转运蛋白在野生型和突变体根皮层中的分布模式分析
进一步研究发现,Osidd8单突变体根尖皮层细胞中生长素信号呈现不均匀分布,与野生型生长素均匀分布形成显著差异(图2 A和D)。生长素运输抑制剂NPA处理可部分恢复Osidd8单突变体及Osidd2,3,6,8四突变体的皮层不对称性表型(图2 C,F,G和H),而激素IAA处理则无此效应(图2 B,E和G)。此外,对生长素运输蛋白OsPIN2的细胞组织定位研究发现,在Osidd2,3,6,8四突变体中,OsPIN2的顶端极性定位仅在皮层细胞形态异常、细胞排列紊乱的区域被特异性破坏,呈现非极性定位,而皮层结构完整的区域仍保持正常极性定位(图2 I-K)。上述结果表明, OsIDD在维持正常皮层对称性结构和细胞形态中发挥关键作用,而正常的对称性结构以及细胞形态对维持OsPIN2蛋白极性定位与生长素空间分布至关重要。与拟南芥以 SHR 为核心的调控体系不同,水稻中 OsIDD8 居于相对核心位置,实现激素信号和基本组织分化的信号整合(图3)。
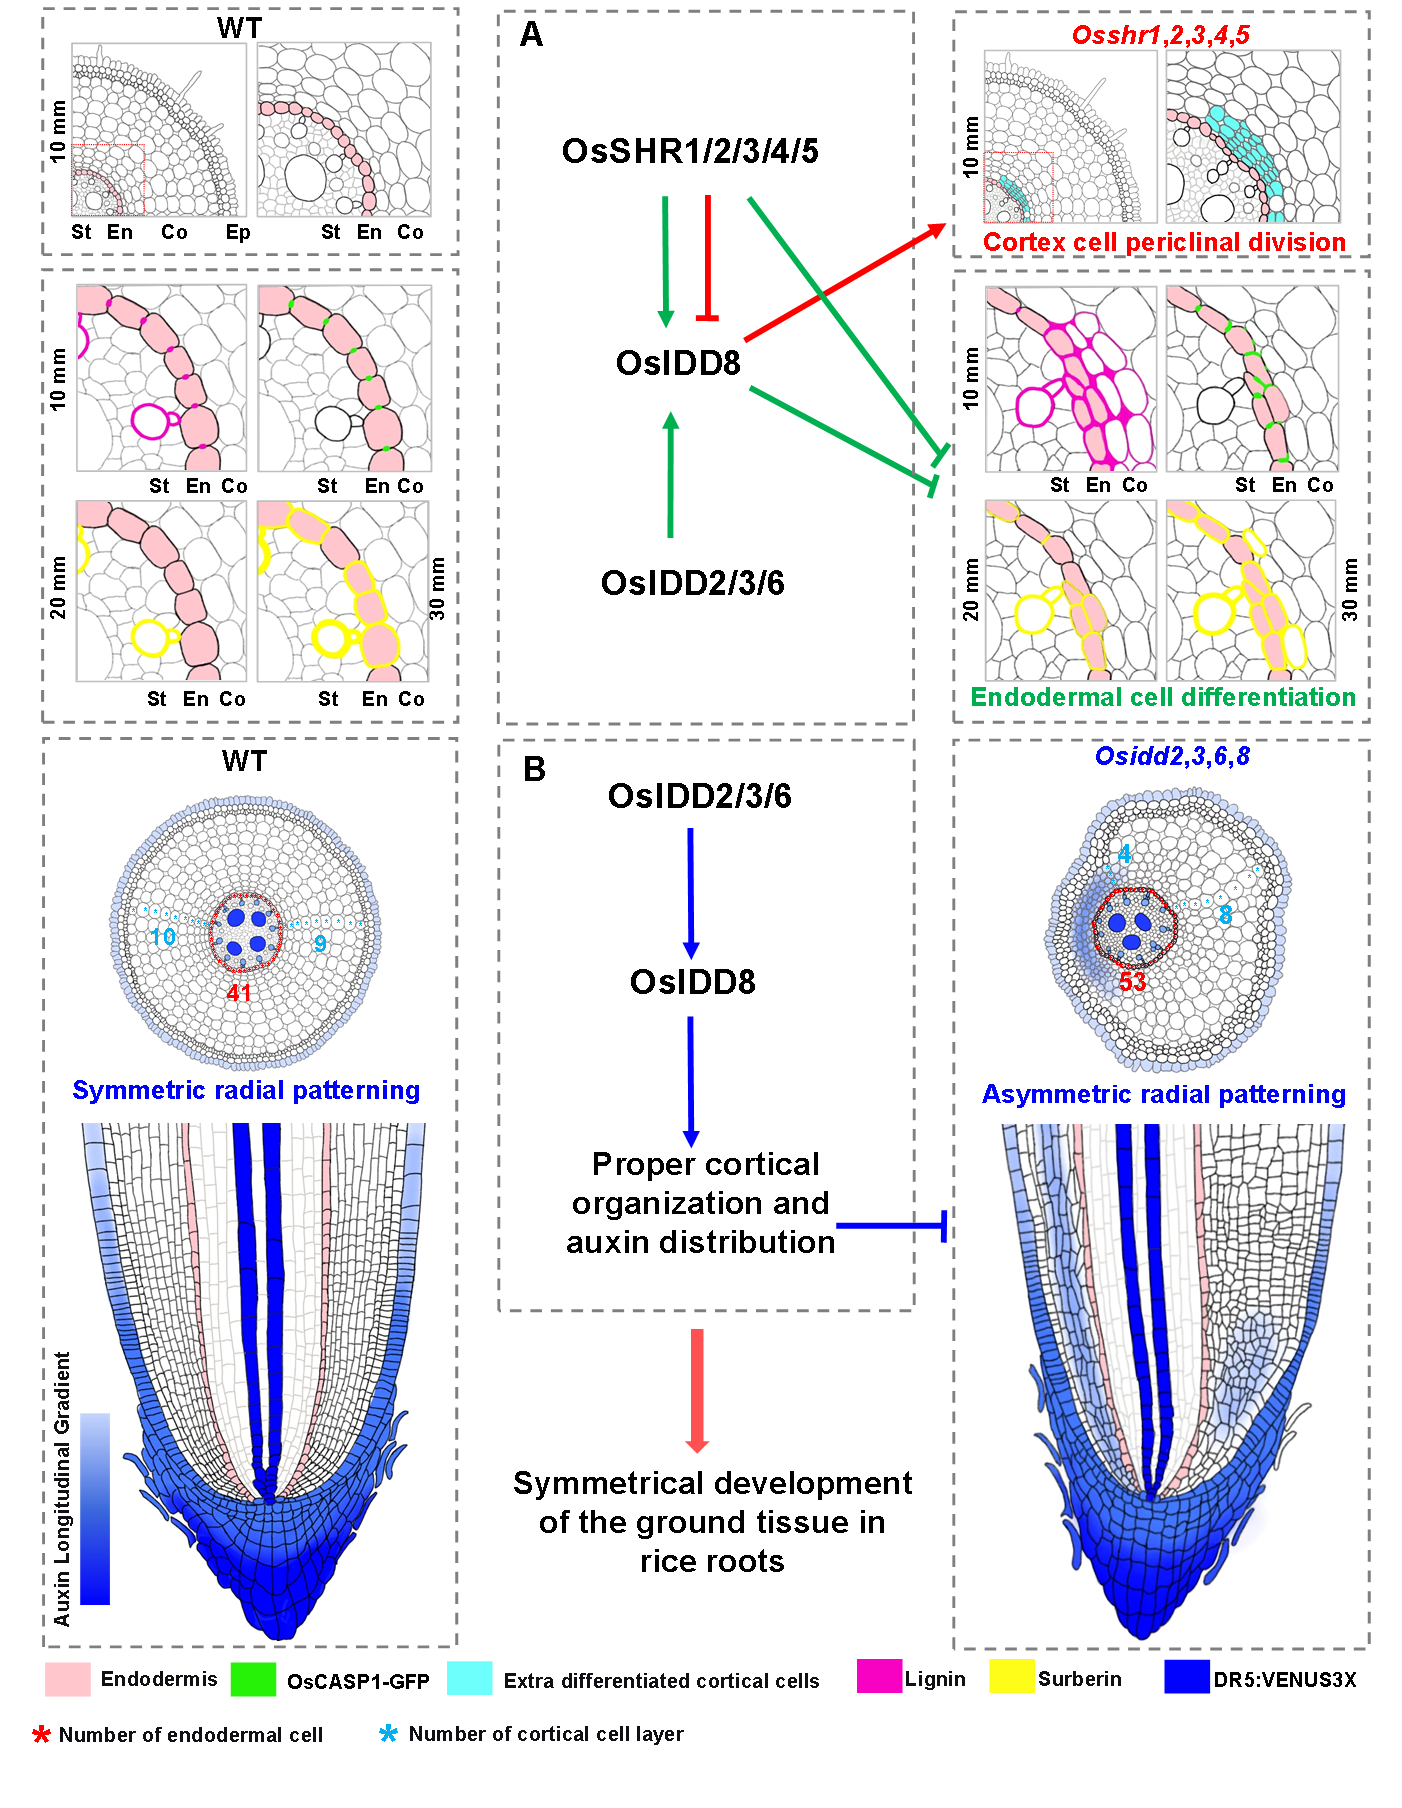
图 3 OsIDD-OsSHR模块调控水稻根基本组织对称性结构形成与功能分化的模式图
综上,该研究建立了 OsIDD‑OsSHR 模块调控水稻根基本组织发育的工作模型(图 3),为根系径向结构的定向改造提供新思路,为抗逆、养分高效水稻育种提供重要靶点和理论支撑。
广西大学生命科学与技术学院博士研究生彭丽云、北京师范大学文理学院陈竹锋副教授为论文共同第一作者,夏继星教授为论文的通讯作者。该研究得到了国家自然科学基金、广西自然科学基金、广东省重点研发计划等项目资助。
论文链接:https://www.science.org/doi/10.1126/sciadv.aeh6396
编辑 | 韦星璇
一审一校 | 黄婧
二审二校 | 王邕
三审三校 | 张积森
